La meraviglia del DNA - livello B2
Wissenschaftlicher Wortschatz und Erklärung
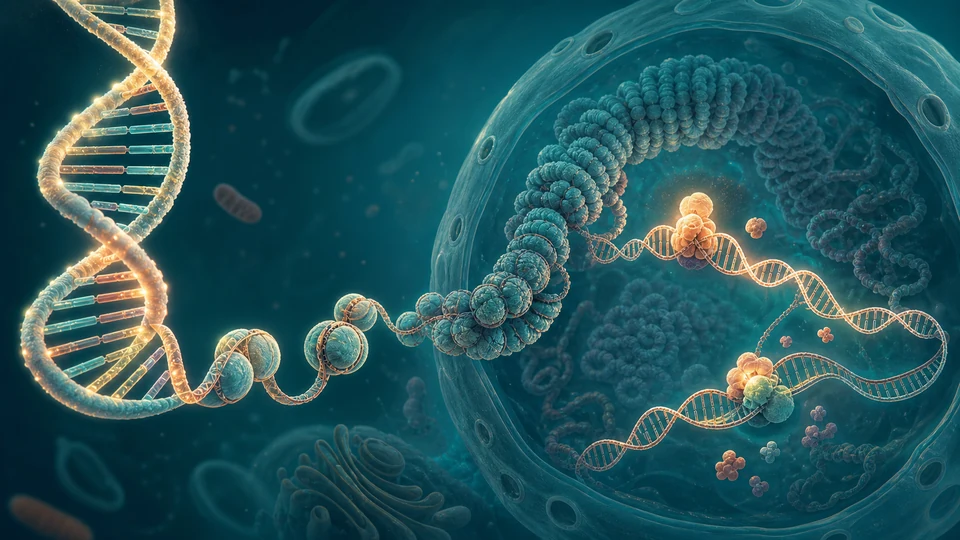
Il DNA umano è un capolavoro non solo per la quantità di informazione che custodisce, ma per il compromesso tra compattazione e accessibilità. In una cellula diploide, la lunghezza totale del DNA nucleare è di circa due metri. Eppure esso deve funzionare in un nucleo il cui diametro è generalmente compreso nell'ordine di pochi micrometri.
La compattazione comincia con i nucleosomi: circa 147 coppie di basi compiono quasi due giri attorno a un ottamero di istoni. Questi “rocchetti” molecolari non sono semplici imballaggi. La loro posizione e le modificazioni chimiche degli istoni influenzano la possibilità di raggiungere una sequenza. I nucleosomi partecipano quindi alla regolazione, oltre che alla compattazione.
A scale maggiori, la cromatina forma anse e domini tridimensionali. Proteine come le coesine contribuiscono a estrudere anelli, mentre fattori architettonici aiutano a stabilirne i confini. L'organizzazione non è rigida: cambia quando una cellula si differenzia, risponde a un segnale, ripara un danno o si prepara alla divisione.
La metafora della pallina da tennis richiede una precisazione. Scalando un nucleo di 5-10 micrometri fino a circa 6,7 centimetri, due metri di DNA diventerebbero un filo di circa 13-27 chilometri. Con nuclei più piccoli si possono ottenere valori più alti. “Quaranta chilometri” non è impossibile come immagine estrema, ma “decine di chilometri” è una formulazione più robusta.
Il genoma aploide umano completo misura poco più di tre miliardi di coppie di basi. Se si assegna a ogni base una delle quattro combinazioni di due bit, la capacità grezza è circa 6,1 miliardi di bit, ossia 760 milioni di byte. Il genoma diploide porta il totale a circa 1,5 gigabyte. Sono confronti matematici, non misure del “contenuto di una persona”: ignorano il contesto cellulare, la struttura tridimensionale, l'epigenetica e la complessa relazione tra sequenza e funzione.
La densità massima ideale si può stimare dalla massa molecolare delle coppie di basi. Il risultato è circa 2,3 × 10²⁰ byte per grammo: 230 exabyte, equivalenti a circa 228 miliardi di gigabyte. Le tecnologie reali devono sacrificare parte di questa capacità per aggiungere indici, ridondanza e codici di correzione. Nel 2017 DNA Fountain ha dimostrato un recupero corretto a 215 petabyte per grammo, circa un millesimo del limite ideale ma ancora immensamente superiore ai supporti convenzionali.
Il DNA biologico non è stato progettato come un disco rigido. Le sue sequenze hanno vincoli chimici e funzionali; contengono ripetizioni, elementi mobili e tracce dell'evoluzione. Circa ventimila geni codificano proteine, mentre gran parte del genoma non le codifica. “Non codificante”, tuttavia, non significa automaticamente “inutile”: vi si trovano sequenze regolatrici, geni per RNA, centromeri, telomeri e regioni con funzioni strutturali. Altre porzioni possono non avere una funzione selezionata.
Ogni individuo nasce dall'unione di due genomi aploidi. Nella meiosi, cromosomi omologhi materni e paterni si appaiano e possono scambiarsi segmenti mediante ricombinazione. Ogni gamete riceve così una combinazione irripetibile di 23 cromosomi. Dopo la fecondazione, le cellule del nuovo organismo possiedono normalmente due alleli per ogni gene autosomico, uno di origine materna e uno paterna.
La formula ha eccezioni: il DNA mitocondriale è ereditato quasi sempre per via materna; X e Y non portano le stesse serie di geni; alcuni geni sono soggetti a imprinting, per cui l'attività dipende dal genitore di origine. Inoltre, mutazioni somatiche e particolari riarrangiamenti nelle cellule immunitarie possono creare piccole differenze tra cellule dello stesso corpo.
La replicazione è semiconservativa: ciascuna nuova doppia elica conserva un filamento vecchio e ne contiene uno appena sintetizzato. L'elicasi separa i filamenti; le primasi preparano brevi inneschi; le DNA polimerasi estendono le nuove catene solo in una direzione. Per questo il filamento guida viene sintetizzato in modo continuo, mentre quello ritardato nasce come una serie di frammenti di Okazaki, successivamente saldati dalla ligasi.
La precisione deriva da controlli consecutivi. La geometria del sito attivo della polimerasi favorisce la base corretta; l'attività esonucleasica elimina molti inserimenti sbagliati; il mismatch repair controlla il DNA dopo il passaggio della forcella. Altri sistemi riparano basi danneggiate, rotture e lesioni provocate da radiazioni o reazioni chimiche. La correzione deve essere straordinariamente efficace, ma non assoluta: senza una minima variazione ereditaria non esisterebbe evoluzione.
Anche la lettura del DNA richiede un'apertura controllata. Fattori di trascrizione riconoscono sequenze specifiche; complessi di rimodellamento consumano energia per far scorrere o rimuovere nucleosomi; modificazioni degli istoni rendono alcune regioni più favorevoli all'accesso. Enhancer lontani possono essere avvicinati ai promotori grazie al ripiegamento tridimensionale. Infine, la RNA polimerasi apre una piccola bolla nella doppia elica e trascrive uno dei filamenti.
Il paradosso apparente si risolve così: il DNA è compatto ma non sigillato, stabile ma non immobile, uguale in quasi tutte le cellule ma interpretato in maniera diversa. La sua meraviglia risiede tanto nella sequenza quanto nella capacità della cellula di organizzare e interrogare quella sequenza nel tempo e nello spazio.
Nützliche Worte
compattazione = Verdichtung
accessibilità = Zugänglichkeit
ottamero = Oktamer
ansa = biegen
coesina = Kohäsin
ridondanza = Redundanz
ricombinazione = Rekombination
imprinting = Prägung
semiconservativo = halbkonservativ
esonucleasi = Exonuklease
Verständnis
- Perché il nucleosoma è anche un regolatore?
- Quali controlli rendono fedele la replicazione?
- In che senso il DNA è stabile ma dinamico?